Když se houbař vrátí ze smrkového lesa s prázdným košem a soused přiveze plné auto z březiny kilometr odtud, je lákavé to svést na štěstí. Skutečné vysvětlení se ale jmenuje mykorhiza: souhra mezi houbou a kořeny konkrétního stromu, bez níž plodnice vůbec nevznikne. Mykorhiza jako taková je stará přes čtyři sta milionů let; ta, kterou hřiby tvoří se stromy, vznikla mnohem později.
Co je mykorhiza a proč existuje
Mykorhiza (z řec. mykés = houba, rhiza = kořen) je symbiotické soužití houbového mycelia s kořeny cévnatých rostlin [1]. Houba buď oplete jemné kořínky stromů hustou sítí hyf (ektomykorhiza), nebo pronikne přímo do buněk kořene (endomykorhiza). Výměna je přísně oboustranná: strom dodává houbě fotosyntézou vyrobené cukry, houba to oplácí minerálními živinami (hlavně fosforem a dusíkem) a vodou, které by kořen sám z půdy nevytáhl [1][2].
Tato symbióza je evolučně stará zhruba 460 milionů let; fosilní záznamy ukazují, že první suchozemské rostliny kolonizovaly pevninu pravděpodobně právě díky houbovým partnerům [2]. Bez mykorhizy by stromové porosty, jak je dnes známe, pravděpodobně neexistovaly.
Ektomykorhiza vs. endomykorhiza: kdo s kým
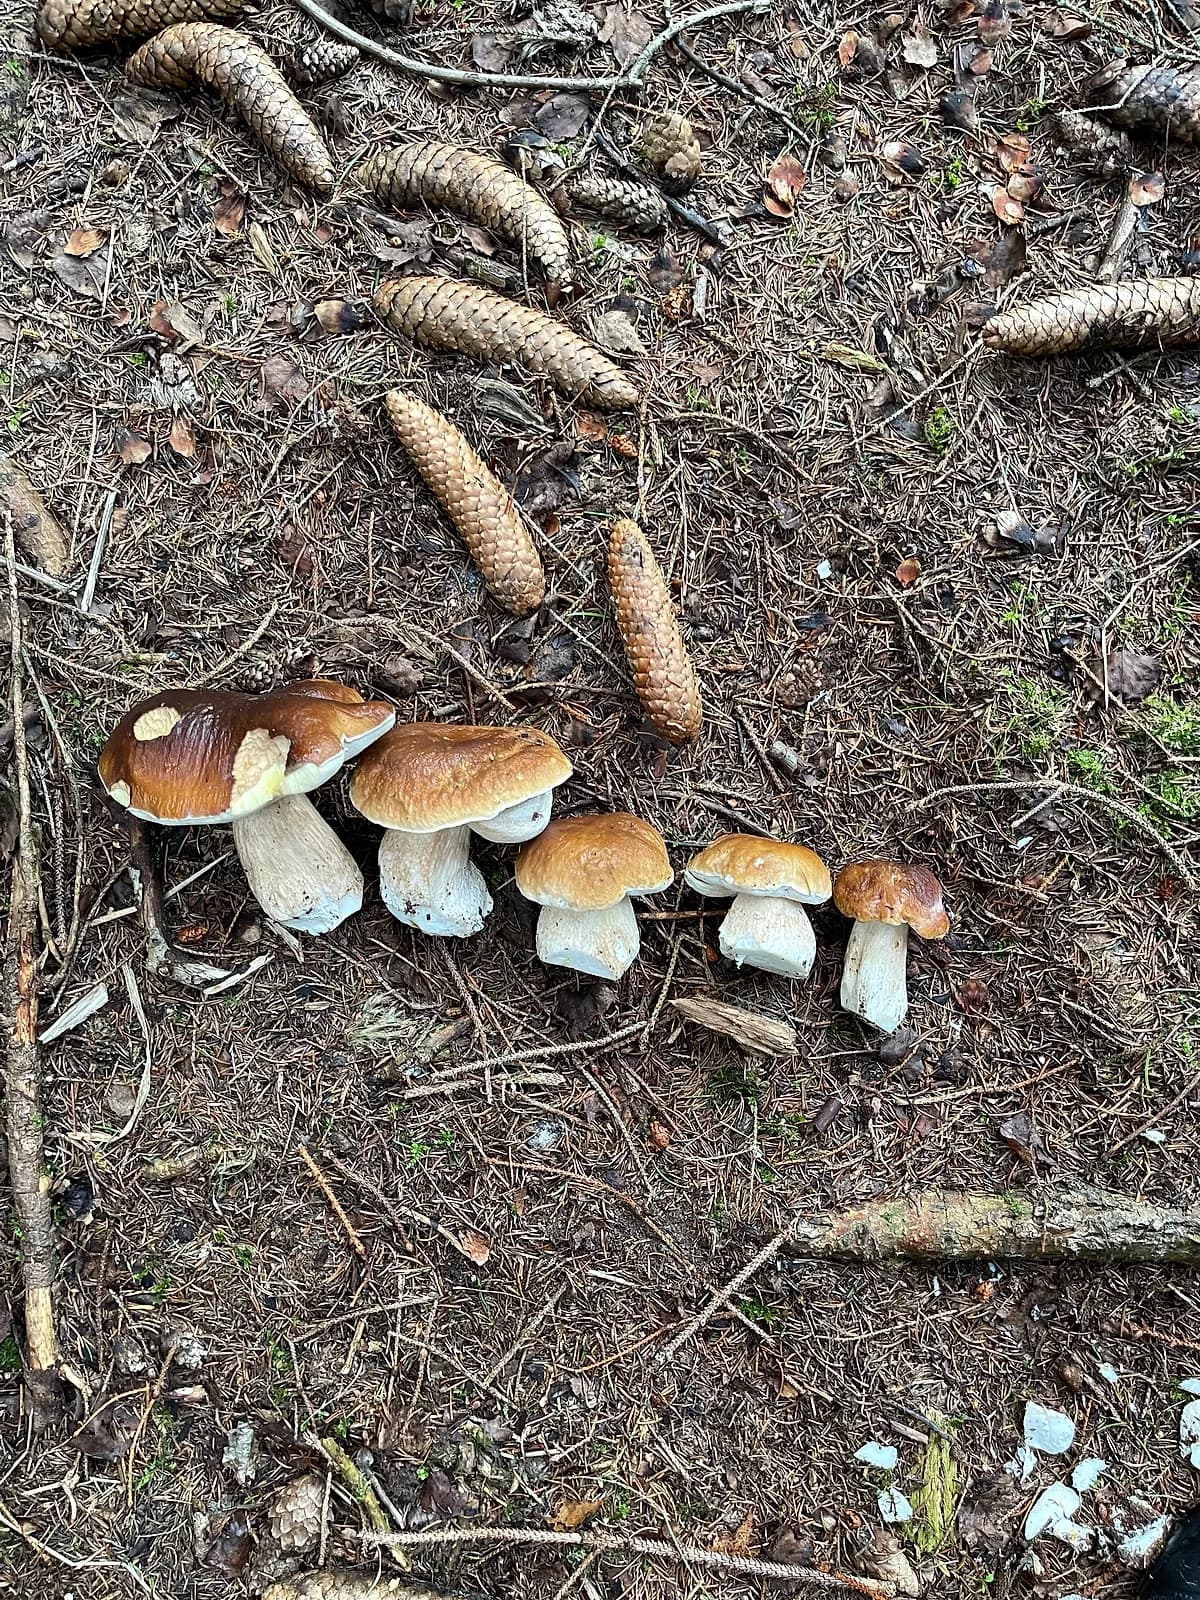
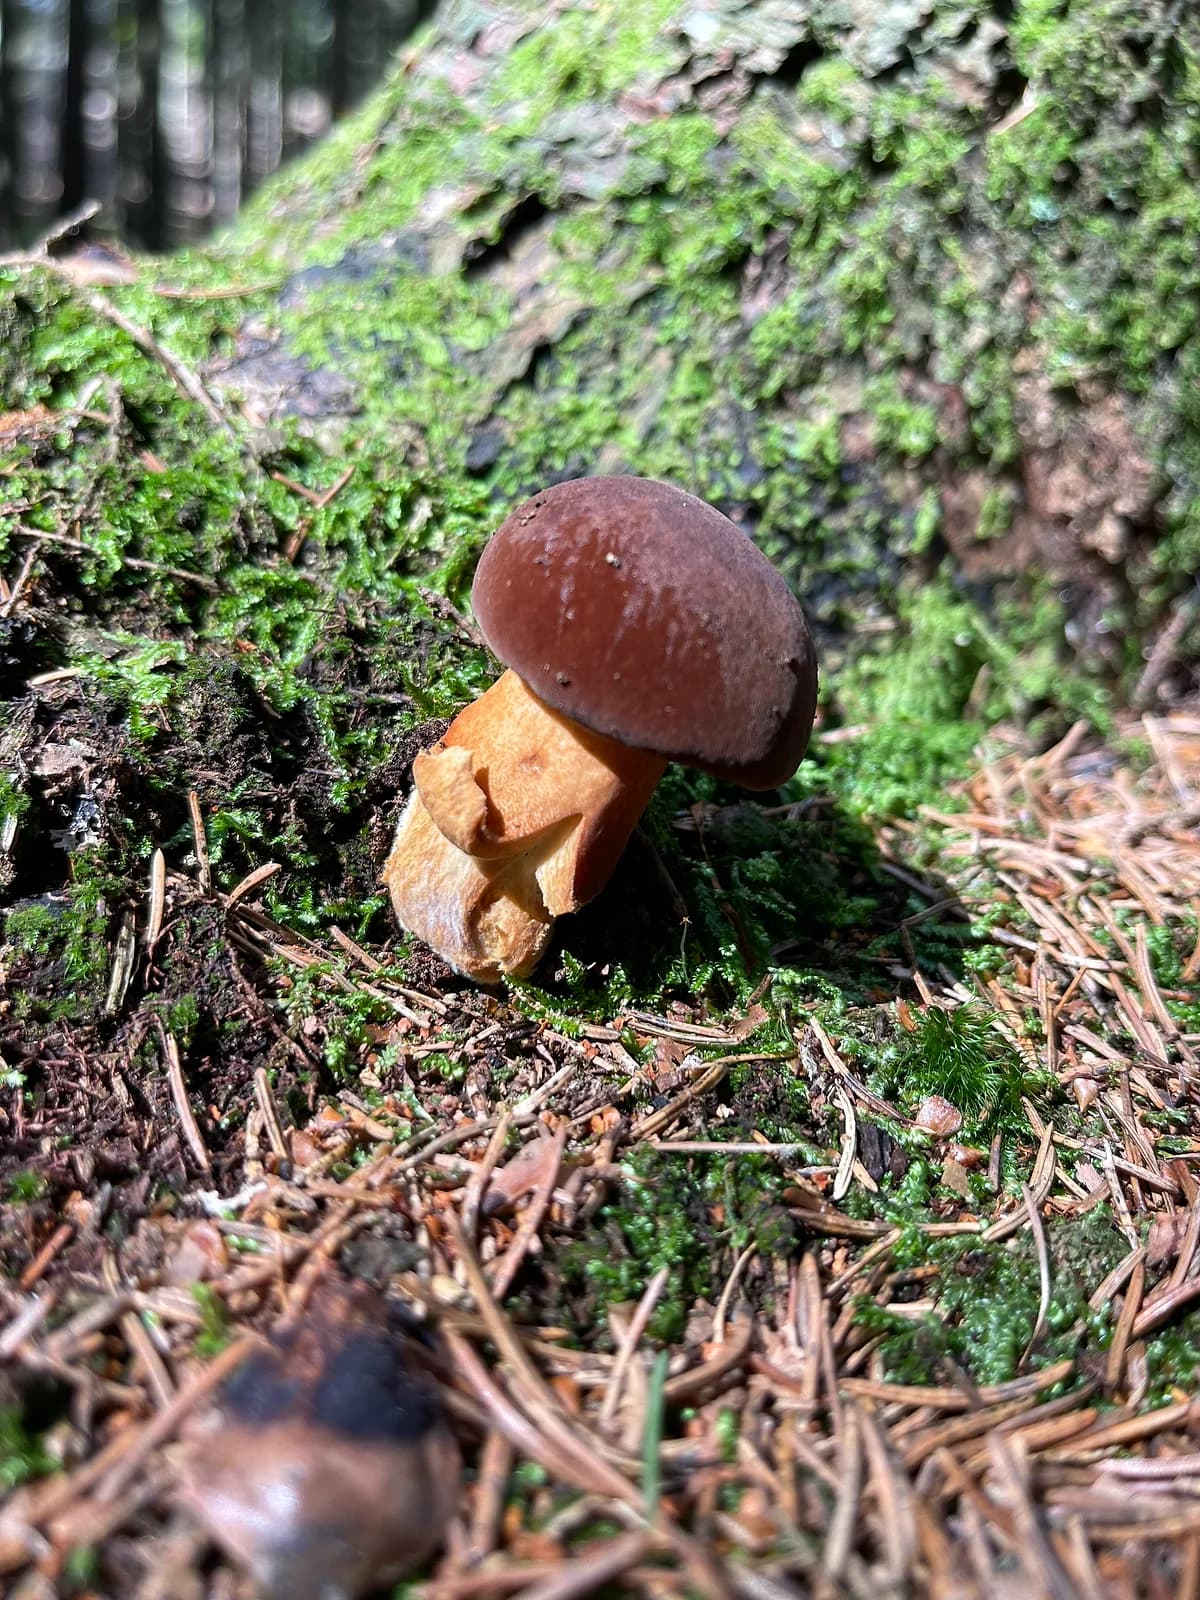
Pro houbaře je nejdůležitější ektomykorhiza (ECM), která dominuje v temperátních lesích. Tvoří ji většina jedlých hub: hřibovité, kozáci, klouzky, lišky, ryzce, holubinky. Druhy si partnery nevybírají náhodně: hřib smrkový (Boletus edulis) je vázán především na smrk ztepilý a borovici, zatímco kozák březový (Leccinum scabrum) funguje téměř výhradně s břízou; kozáky jsou až na výjimky vázané na jediný rod stromů [4].
Endomykorhiza (arbuskulární, AM) je naopak typická pro zemědělské plodiny, trávy a část lesních bylin. Houby AM patří do skupiny Glomeromycota a nevytváří velké plodnice, pro houbaře jsou prakticky neviditelné. Lanýže (Tuber spp.) mezi ně nepatří: jsou to ektomykorhizní vřeckovýtrusné houby, které jen plodí pod zemí [3].
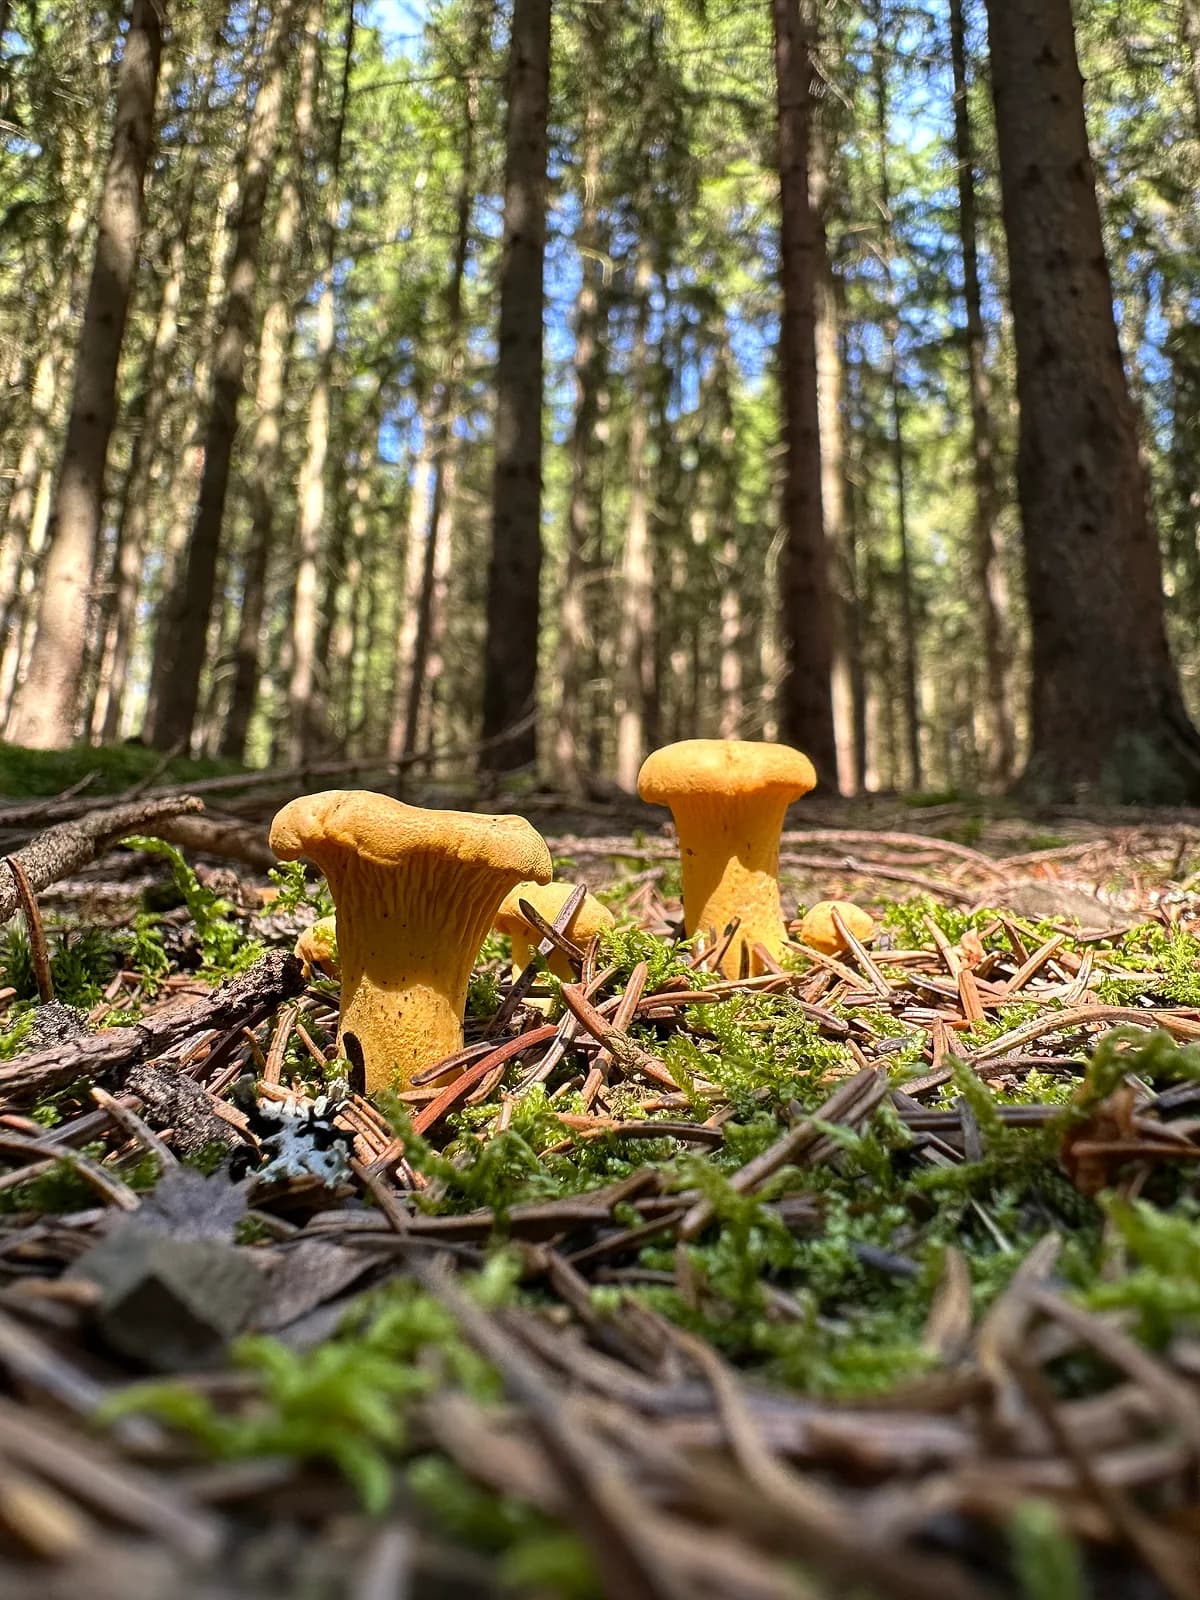
Přehled Tedersoo et al. (2010) doložil ektomykorhizu u 162 rodů hub a ukázal, že u hub vznikla nezávisle nejméně 66krát [3]. Hostitelská specificita se přitom liší druh od druhu: od úzce specializovaných (jeden rod stromů) až po druhy s mnoha hostiteli, a to i v rámci jednoho rodu, jako u kozáků [4]. Lišce obecné (Cantharellus cibarius) stačí širší škála (borovice, smrk, dub, buk), ale i ona má preference dané místní půdní chemií.
Druhová specificita v praxi: najdi strom, najdeš houbu
Praktický důsledek pro houbaře je přímočarý: biotop je prediktor číslo jedna, daleko důležitější než aktuální počasí. Hřib smrkový hledáš pod smrky, kozák březový v březinách nebo na jejich okrajích [4], hřib dubový (Boletus reticulatus) v teplejších doubravách a dubohabřinách. Znalost druhu stromu ti zúží prohledávanou plochu mnohonásobně dřív, než vůbec zapneš telefonní aplikaci.
Terénní pravidlo: čím čistší porost, tím větší pravděpodobnost velké úrody jednoho konkrétního druhu. Smrková monokultura s bonitním myceliem hřibu smrkového může za správných podmínek přinést desítky kilogramů na hektar. Smíšený les bude druhově bohatší, ale průměrná hustota jakéhokoli jednoho druhu bude nižší.
Biotop je nejspolehlivější vodítko. Hřib smrkový bez hostitelského stromu prostě nevyroste. To není pověra, to je fyziologie.
Co z mapy nevyčteš: individuální variabilita a stáří mycelia
Ani dokonalá biotopová mapa nezaručí úspěch. Mycelium je vytrvalý organismus, ale potřebuje čas na usazení. V mladých porostech se společenstvo hub teprve skládá: ve smíšených lesích v Kanadě byla u douglasky pestrost v pětiletých porostech nižší a v 26letých už ustálená (u břízy se nelišila), složení se ustálilo až v 65letých porostech [5]. Naopak staré lesní porosty s usazeným myceliem mohou být stabilně produktivní desítky let.
Druhá proměnná je lokální populační hustota mycelia. Dva smrkové porosty se stejnou strukturou, vzdálené od sebe dva kilometry, mohou mít výrazně odlišné mycelní zásoby. Příčiny nejsou vždy zřejmé: historické narušení porostu, lokální půdní pH, soupeření s jinými houbovými druhy. Pro houbaře to znamená: i zdánlivě dobrá lokalita musí být ověřena opakovanými návštěvami v různých sezonách.
Shrnutí pro houbaře
Mykorhiza vysvětluje, proč čistě počasářský pohled na houbaření selhává. Srážkový model ti řekne, kdy je vlhkost dostatečná, ale neřekne ti, zda v daném lese vůbec existuje mycelium schopné plodit. Kombinace biotopové znalosti (jaký strom, jak starý les, jaké pH půdy) a meteorologické připravenosti (viz časová osa před výpravou) je základ systematického houbaření.
Mykoindex tuhle vazbu promítá jen hrubě: na mapě bere v úvahu, kolik je ve čtverci lesa, ne jaké stromy v něm rostou, takže smrčinu od doubravy index nerozliší; kde který druh roste, hledej v atlasu. Volitelná vrstva Hřiby na detailní mapě nechá barvu jen v jehličnatých a smíšených lesích. Jak index s lesem počítá, rozebírá sekce Věda.
Související druhy v atlasu
Faktor mykoindexu
Tato část mykoindexu je vizuálně zpracovaná v sekci Věda. Podívej se na rozklad faktorů, které ovlivňují růst hub.
Zdroje a citace
- [1]Smith, S.E. & Read, D.J. (2008). Mycorrhizal Symbiosis. Academic Press, Londýn, 3. vydání.
- [2]Wang, B. & Qiu, Y.-L. (2006). Phylogenetic distribution and evolution of mycorrhizas in land plants. Mycorrhiza, 16(5), 299–363. https://doi.org/10.1007/s00572-005-0033-6
- [3]Tedersoo, L., May, T.W. & Smith, M.E. (2010). Ectomycorrhizal lifestyle in fungi: global diversity, distribution, and evolution of phylogenetic lineages. Mycorrhiza, 20(4), 217–263. https://doi.org/10.1007/s00572-009-0274-x
- [4]den Bakker, H.C., Zuccarello, G.C., Kuyper, T.W. & Noordeloos, M.E. (2004). Evolution and host specificity in the ectomycorrhizal genus Leccinum. New Phytologist, 163(1), 201–215. https://doi.org/10.1111/j.1469-8137.2004.01090.x
- [5]Twieg, B.D., Durall, D.M. & Simard, S.W. (2007). Ectomycorrhizal fungal succession in mixed temperate forests. New Phytologist, 176(2), 437–447. https://doi.org/10.1111/j.1469-8137.2007.02173.x